

1. 서 론
2. 재료 및 방법
2.1. 연구대상지
2.2 수질 및 식물플랑크톤 분석
2.3 데이터 수집
2.4 통계분석
3. 결과 및 고찰
3.1 기후 및 수문학적 요인 변동
3.2 이화학적 요인 변동
3.3 식물플랑크톤 정량 분석 결과
3.4 식물플랑크톤 군집 구조 변화
3.5 식물플랑크톤 군집의 공출현 네트워크 및 기여도 분석
4. 결 론
1. 서 론
식물플랑크톤은 수생태계의 1차 생산자(primary producers)로서 수생 먹이망의 기초를 형성하고 탄소 고정과 질소(Nitrogen, N)·인(Phosphorus, P) 등 영양염 순환에 직접적으로 관여하는 핵심 생물군이다(Field et al., 1998; Carr et al., 2006; Naselli-Flores and Padisák, 2023). 또한 생활사가 짧고 수온, 광 조건, 영양염 농도, 수체 혼합 및 체류시간(hydraulic residence time, HRT) 변화에 빠르게 반응하기 때문에, 식물플랑크톤 군집 구조의 변화는 수환경 변동을 반영하는 생물학적 지표로 널리 활용된다(NIER, 2013; Louchart et al., 2023). 특히 우점종 변화, 남조류 출현 시기 및 지속기간의 변화는 단순한 생물량 증가를 넘어 수체의 물리·화학적 조건 변화와 생태계 기능 변화를 함께 반영한다는 점에서 중요한 의미를 가진다.
온대 호소의 식물플랑크톤 군집은 일반적으로 계절적 천이에 따라 봄철 규조류, 하절기 녹조류 또는 남조류, 추계 규조류 재우점과 같은 주기적 변화를 보인다(Reynolds, 2006; Paerl and Huisman, 2008). 그러나 최근 기후변화로 인해 고수온 지속, 집중강우, 가뭄 및 극한 수문사상의 변동성이 증가하면서 이러한 전형적 천이 경로가 교란될 가능성이 제기되고 있다(IPCC, 2023). 고수온은 남조류의 생장과 증식을 유발할 수 있으며, 집중강우는 유입량 증가, 체류시간 변화, 외부 기원 영양염 유입 증가를 동시에 유발한다(Paerl and Paul, 2012; Rose et al., 2023; Hutchins and Tagliabue, 2024). 따라서 최근의 식물플랑크톤 연구는 수온이나 영양염과 같은 단일 요인의 영향보다는 기후 요인, 수문학적 요인, 영양염 공급이 복합적으로 작용하여 군집 구조를 어떻게 재편하는지에 주목하고 있다.
특히 인공호 및 저수지에서는 이러한 복합적 영향이 더욱 뚜렷하게 나타난다. 인공호는 하천을 댐으로 차단하여 형성된 수체이기 때문에 유입부, 중앙부, 댐 전면부로 이어지는 종단 구배가 발달하고, 유입하천의 수질 특성, 방류 운영, 지형 조건에 따라 HRT, 혼합 강도, 영양염 농도가 크게 달라질 수 있다(Cardoso et al., 2012; Rodrigues and da Motta-Marques, 2018). HRT는 식물플랑크톤이 증식할 수 있는 시간적 조건뿐 아니라 영양염의 체류, 플러싱 효과, 수체 안정성에 영향을 미치는 핵심 수문학적 변수이다(Alvarez-Cobelas et al., 2019; Znachor et al., 2020). 따라서 동일한 영양염 수준에서도 HRT와 혼합 조건이 달라질 경우, 군집 구조는 상이하게 나타날 수 있다(Chung et al., 2019; Son et al., 2024). 이러한 이유로 인공호의 식물플랑크톤 변동을 해석하기 위해서는 수질 요인뿐만 아니라, 기상학적 요인과 수문학적 요인을 함께 고려하는 통합적 접근이 필요하다.
최근 연구들은 서로 다른 기후·수문 조건에서 식물플랑크톤 생물량, 다양성, 군집 구조 및 우점 분류군 조성이 달라질 수 있음을 보고하고 있다(Meng et al., 2023; Qi et al., 2024). 특히 저수지와 인공호에서는 강수량, 유입량, 체류시간, 유량 관리 및 극한 수문사상과 같은 수문 조건의 차이가 수질 변화와 결합하여 식물플랑크톤 군집 동태와 기능군 조성 변화에 관여하는 것으로 보고되었다(Luong et al., 2024).
국내에서는 북한강 수계의 인공호를 중심으로 강우, 수온, 영양염, 체류 특성과 남조류 발생의 관련성이 지속적으로 보고되어 왔다. 특히 의암호 및 공지천 하류에서는 남조류와 이취미 물질 발생, 도시하천 유입 및 하수처리장 방류수의 영향 가능성이 제시되었으며(Lee et al., 2016; Hwang et al., 2017; Baek et al., 2019; Youn et al., 2019), 의암호를 대상으로 한 선행연구들은 수질의 시·공간적 변동, 공지천 유입부의 부영양화 특성, 식물플랑크톤 군집의 계절적 변화 등을 보고하여 의암호 수환경 및 생물군집 특성을 이해하는 데 중요한 기초자료를 제공하였다(Cho, 1968; Choe et al., 2001; Lee et al., 2016; Hwang et al., 2017; Im et al., 2023).
그러나 기존 연구들은 주로 특정 조사기간의 계절 변화, 특정 남조류 발생 양상, 또는 일부 수역의 수질 특성에 초점을 두었으며, 서로 다른 기상·수문 조건을 보인 시기 간 식물플랑크톤 군집 구조를 수환경 조건과 함께 통합적으로 해석한 연구는 아직 제한적이다. 따라서 본 연구는 상이한 기상·수문 조건이 나타난 연도 간의 비교를 통해 기후 및 수환경 변화에 따른 식물플랑크톤 군집 반응을 평가하고자 하였다. 이를 위해 2024년 조사한 식물플랑크톤 자료를 2014·2015년 군집자료와 비교·분석하여 (1) 시기별 우점속 및 군집 구조 변화 경향을 평가하고, (2) 기후 및 수환경 요인의 변동이 군집 변화에 미치는 영향을 종합적으로 해석하였다.
2. 재료 및 방법
2.1. 연구대상지
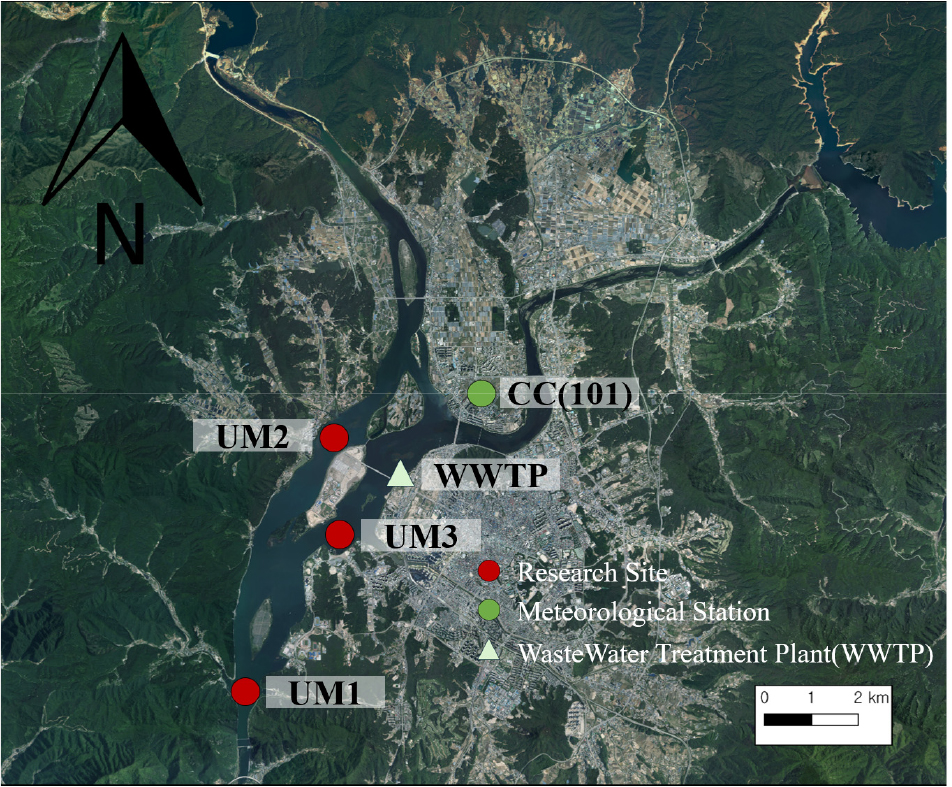
본 연구는 북한강 수계 중류에 위치한 의암호(37° 52'53''N, 127° 42'07''E)에서 수행하였다(Fig. 1). 의암호는 의암댐 건설로 형성된 하천형 호수로, 유역면적 7,709 km2, 저수면적 15 km2, 총저수용량 80.0 × 10⁶ m3(유효저수량 57.6 × 10⁶ m3)이며, 호의 길이와 폭은 각각 약 8 km 및 5 km로 타원형에 가까운 형태를 가진다. 의암호는 상류의 춘천댐 및 소양강댐 방류량의 영향을 받으며, 하류의 청평호 및 팔당호 수질에도 연쇄적 영향을 미치는 것으로 알려져 있다(Choi et al., 2015). 의암호는 다수의 섬이 분포하는 수역 구조를 가지며, 섬에 의해 본류 흐름이 분산되면서 HRT의 공간적 이질성이 형성될 수 있다. 본 연구에서는 이러한 공간적 이질성을 고려하여 3개 정점(UM1~UM3)을 선정하여 수행하였다. UM1은 댐 전면 수역에 위치하며, UM2와 UM3은 호소 중앙부 수역의 우안과 좌안에 각각 위치한다. 현장조사는 2024년 6월부터 11월까지 월 1회 주기로 수행하여 수질분석 및 식물플랑크톤 동정을 수행하였다. 단, 집중호우로 인해 현장 접근 및 안전 확보가 어려웠던 7월은 조사 기간에서 제외하였다.
2.2 수질 및 식물플랑크톤 분석
각 조사정점에서 다항목 수질측정기(YSI Proplus, USA)를 사용하여 호수 표층(0 m)의 수온(Water Temperature, WT), pH 및 용존산소(Dissolved Oxygen, DO)를 현장에서 측정하였다. 채수된 시료는 실험실로 운반하였으며, 클로로필-a (Chlorophyll-a, Chl-a), 총질소(Total Nitrogen, TN), 총인(Total Phosphorus, TP), 총유기탄소(Total Organic Carbon, TOC)는 수질오염공정시험기준(NIER, 2024)에 따라 분석하였다. 호소의 부영양화도는 채수된 시료의 Chl-a, TP, TOC 값을 기반으로 National Institute of Environmental Research (NIER, 2006)에서 개발한 한국형 부영양화지수(TSIko)를 적용하여 평가하였다.
식물플랑크톤 시료는 현장에서 Lugol’s solution으로 최종 농도 2%(v/v)가 되도록 고정한 후 암조건에서 운반 및 보관하였다. 시료의 동정 및 계수는 충분히 균질화된 시료 1 mL를 Sedgewick-Rafter counting chamber에 분주한 뒤, 광학현미경(Olympus BX53, Japan)을 이용하여 100~200배율 하에서 직접계수법(direct counting method)을 실시하였다. 계수된 자료는 단위 부피당 세포수(cells/mL)로 환산하였으며, 출현 속(genus)의 상대풍부도를 기준으로 우점속과 아우점속을 산출하여 군집 구조를 분석하였다. 분류 및 동정은 「한국담수조류도감」(Chung, 1993)과 「일본담수조류도감」(Hirose et al., 1977)을 기본 분류키로 활용하였으며, 「팔당호 식물플랑크톤 사진집」(NIER, 2004)과 Freshwater Algae of North America (Wehr et al., 2015) 등을 보조 자료로 참고하였다.
2.3 데이터 수집
본 연구에서는 식물플랑크톤 군집 특성을 비교하기 위해, 동일한 조사정점에서 수행된 「한강수계 호소환경 및 생태조사 보고서」(HWMC, 2014; 2015)의 현장 실측 자료와 식물플랑크톤 군집자료를 활용하였다. 월별 식물플랑크톤 자료는 2024년 군집과 비교를 위해 속 수준으로 통합하였으며, 수질 항목은 WT, 생화학적 산소요구량(Biological Oxygen Demand, BOD), Chl-a, TN, TP, TOC 항목을 분석에 활용하였다. 기상 및 수문자료는 국가수자원관리 종합정보시스템(WAMIS, 2026)에서 수위·유입량·방류량 자료를, 기상청 기상자료개방포털(www.kma.go.kr)에서 춘천 기상대(101)의 2000~2024년 일 강수량 및 기온 자료를 수집하여 활용하였다. 수집된 기초자료는 항목별 결측치 및 이상치를 검토한 후 분석에 적용하였으며, HRT는 저수량(V)과 유입유량(Q)을 이용하여 다음과 같이 산정하였다(Eq. (1)).
2.4 통계분석
식물플랑크톤 군집과 환경요인 간 연결성을 평가하기 위해 공출현(co-occurrence) 네트워크 분석을 수행하였다. 분석에는 속 수준의 식물플랑크톤 현존량과 환경요인 자료를 사용하였으며, 현존량이 100 cells/mL 이상인 속을 분석 대상으로 포함하였다. 환경요인은 WT, pH, DO, EC, SS, TN, TP, TOC, Chl-a, HRT, 선행 5일 누적강수량(Antecedent Precipitation, AP5)을 사용하였다. 네트워크 구축을 위해 식물플랑크톤과 환경요인을 포함한 모든 노드 간 가능한 모든 쌍에 대해 피어슨 및 스피어만 상관계수를 결합한 앙상블 기반의 상관분석을 수행하였다. 유의성 평가는 동일한 분석 파이프라인에서 999회 순열(permutation)을 수행하여 p 값을 산출하였다. 이후 |r| > 0.5 이면서 p < 0.01을 동시에 만족하는 경우에만 네트워크의 엣지(edge)로 채택하였다. 네트워크에서 노드(node)는 식물플랑크톤 속과 환경요인을 의미하며, 엣지는 노드 간 유의한 상관관계를 나타낸다. 노드 크기는 식물플랑크톤 군집과 환경요인 각각에서 min-max 정규화된 값을 기반으로 산정하였다. 또한 연도 간 군집-환경 연관 구조의 차이를 시각적으로 비교하기 위해 2014, 2015, 2024년을 나타내는 연도 노드를 추가하였다. 연도 노드는 식물플랑크톤 및 환경요인 노드와의 연관성을 기반으로 네트워크 레이아웃 상에서 상대적 위치가 반영되도록 배치하였다. 네트워크 시각화는 Gephi (version 0.10.1)를 이용하여 수행하였다.
또한, 기후 및 수환경 요인과 식물플랑크톤 군집 간의 관계를 통합적으로 평가하기 위해 부분 최소제곱 경로모델(partial least squares-path modeling, PLS-PM)을 적용하였다. 본 모형은 기후 요인, 수환경 물리·화학 요인, 영양염 요인, HRT, 식물플랑크톤 군집의 5개 잠재변수로 구성하였으며, 기후 요인을 타 내생변수를 설명하는 외생변수로 설정하였다. 환경요인은 WT, pH, DO, EC, TN, TP, TOC, Chl-a 등의 지표를 반영하였고, 수문학적 요인은 HRT로 대표하였다. 모든 변수는 표준화하여 사용하였다. 식물플랑크톤 군집에 대한 각 환경 인자의 기여도는 경로 계수를 기반으로 직접효과(변수 간 직접 경로), 간접효과(하나 이상의 매개변수를 거쳐 전달되는 효과의 곱), 그리고 이를 합산한 총효과로 구분하여 산출하였다. 분석은 R 환경에서 PLS-PM 패키지를 이용하여 수행하였으며, 측정 모형 및 판별 타당성 평가는 Hulland (1999)의 기준을 준용하였다.
3. 결과 및 고찰
3.1 기후 및 수문학적 요인 변동
조사기간(6~11월) 동안 2014·2015년 및 2024년은 기온 및 수문 조건에서 뚜렷한 대비를 보였다(Fig. 2). 2024년의 연평균 기온은 13.3℃로 최근 25년 중 가장 높았으며, 조사기간 중 일별 최고기온도 전반적으로 높은 수준을 유지하였다(Figs. 2(a) and 2(b)). 특히 8~9월 최고기온은 중장기 평균(12.3℃)보다 각각 2.8℃와 2.2℃ 높아, 하절기 이후에도 고온 조건이 지속되었다(KMA, 2025). 반면 2014년과 2015년의 연평균 기온은 각각 12.1℃와 12.5℃로 중장기 평균과 유사하였다.
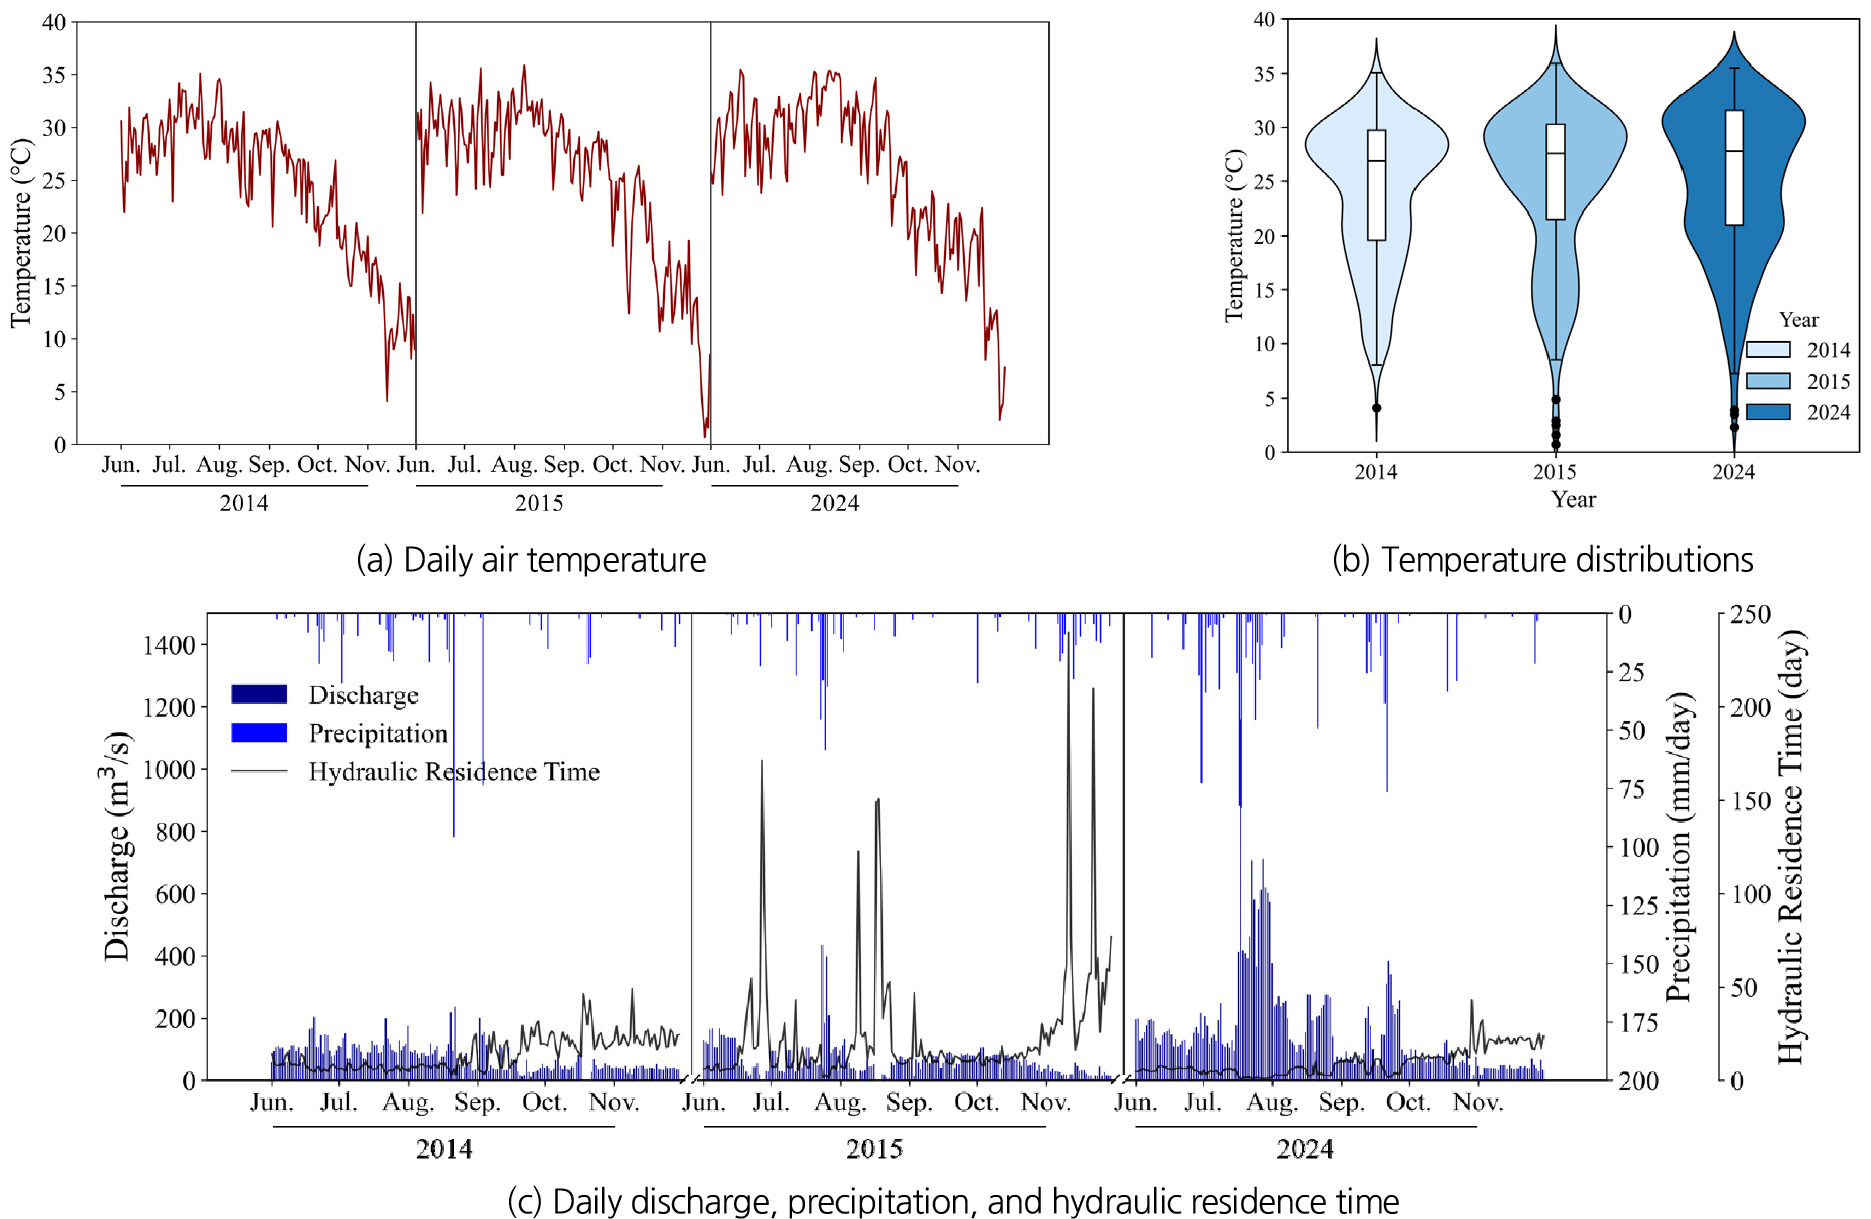
강수량 분석 결과, 2014년은 연강수량이 674.4 mm로 관측기간 중 가장 낮았으며, 여름철(6~8월) 강수량도 351.2 mm로 평년 수준의 절반 이하에 그쳤다. 이러한 저강수 조건은 유입량 감소와 함께 평균 HRT를 약 11일로 증가시켰으며, 이는 과거(2001~2013년) 보고된 평균 HRT인 6일보다 약 2배 긴 수준을 보였다(HWMC, 2014). 2015년에도 여름철 강수량은 327.2 mm로 제한적이었고, 평균 HRT는 16일로 증가하여 수체의 체류 특성이 더욱 뚜렷하게 나타났다(HWMC, 2015). 반면 2024년의 연강수량은 1,220 mm로 2014년의 약 1.8배였으며, 이 중 약 54%인 658 mm가 여름철에 집중되었다. 이에 따른 유입량 및 방류량 증가는 평균 HRT를 약 8일 수준으로 단축시켜 2014·2015년에 비해 수체 교환과 혼합이 상대적으로 활발한 수문 조건을 형성한 것으로 보인다(Jun et al., 2012; Park et al., 2013)(Fig. 2(c)).
이와 같이 2014·2015년은 저강수와 긴 HRT에 따른 수체의 체류 특성이 상대적으로 강했던 반면, 2024년은 고온 조건, 여름철 집중강우, 짧은 HRT가 함께 나타나 수체 교환과 혼합이 비교적 활발한 수문 환경을 보였다.
3.2 이화학적 요인 변동
이화학적 요인은 계절적 변화와 더불어 강수, 유입 및 HRT와 같은 수문 조건의 영향을 받는다. 따라서 본 연구에서는 기상·수문 조건이 상이했던 2014년, 2015년 및 2024년의 월별 수질 특성을 Table 1에 제시하였다. 또한 WT, TP 및 Chl-a의 시기별 변동을 국가 수질측정망 의암호 지점의 2000~2024년 월별 장기평균과 비교하여, 조사연도별 수질 특성의 장기평균 대비 상대적 수준을 평가한 결과는 Fig. 3과 같다.
Table 1.
Seasonal variation in water quality parameters and trophic state classification of Korean Trophic State Index (TSIko) in Lake Uiam (June–November, 2014, 2015, and 2024)
| Parameters | 2014 | 2015 | 2024 | |||||||||||||||
| Jun. | Jul. | Aug. | Sep. | Oct. | Nov. | Jun. | Jul. | Aug. | Sep. | Oct. | Nov. | Jun. | Jul. | Aug. | Sep. | Oct. | Nov. | |
| WT (℃) | 22.2 | 26.2 | 25.0 | 25.4 | 18.5 | 14.2 | 25.0 | 25.5 | 25.5 | 23.0 | 17.7 | 14.0 | 25.0 | 25.2 | 26.5 | 25.2 | 18.6 | 15.4 |
| pH | 8.4 | 8.5 | 8.6 | 8.6 | 7.8 | 7.2 | 8.4 | 8.8 | 8.4 | 8.9 | 8.2 | 8.2 | 8.3 | 7.9 | 8.7 | 8.5 | 8.1 | 7.9 |
| EC (µS/cm) | 105.7 | 108.3 | 105.3 | 113.0 | 103.0 | 100.3 | 111.7 | 129.7 | 102.0 | 120.0 | 106.0 | 89.7 | 116.3 | 119.0 | 95.0 | 103.1 | 92.7 | 80.5 |
| DO (mg/L) | 10.4 | 9.8 | 9.3 | 9.2 | 9.9 | 10.3 | 10.5 | 9.8 | 7.1 | 10.5 | 10.0 | 10.9 | 8.1 | 9.6 | 8.9 | 7.7 | 9.4 | 9.8 |
| TN (mg/L) | 1.5 | 1.6 | 1.5 | 1.4 | 2.1 | 2.7 | 2.1 | 2.3 | 2.2 | 2.4 | 2.5 | 2.8 | 1.6 | 1.0 | 1.5 | 1.4 | 1.6 | 2.0 |
| TP (mg/L) | 0.016 | 0.011 | 0.014 | 0.020 | 0.017 | 0.010 | 0.010 | 0.006 | 0.037 | 0.014 | 0.036 | 0.016 | 0.022 | 0.015 | 0.017 | 0.021 | 0.022 | 0.026 |
| Chl-a (mg/m3) | 10.9 | 5.3 | 4.6 | 3.4 | 7.7 | 4.5 | 4.7 | 11.5 | 17.0 | 16.4 | 7.8 | 8.6 | 1.1 | 4.1 | 13.9 | 19.3 | 10.1 | 5.3 |
| TOC (mg/L) | 2.1 | 2.4 | 2.5 | 2.1 | 2.0 | 1.4 | 2.2 | 2.4 | 2.9 | 2.7 | 4.0 | 2.9 | 1.9 | 2.3 | 1.5 | 1.8 | 2.0 | 1.7 |
| TSIko | M | M | M | M | M | O | M | M | E | M | M | M | M | M | M | M | M | M |
조사기간 동안 WT는 2014년 14.2~26.2℃, 2015년 14.0~25.5℃, 2024년 15.4~26.5℃의 범위를 보였다(Table 1). WT는 모든 조사연도에서 하절기에 높고 추계로 갈수록 감소하는 계절적 변동을 나타냈으며, 이는 2000~2024년 장기평균의 월별 변화와 대체로 유사하였다(Fig. 3(a)). 일부 하절기 관측값은 장기평균을 상회하였으며, 특히 2024년에는 6~9월을 중심으로 비교적 높은 수온이 유지되었다. pH와 EC는 조사기간 동안 비교적 안정적인 범위를 보였으며, DO는 대체로 9.0 mg/L 내외였으나 하절기 일부 시기에는 7.0 mg/L 수준까지 감소하였다. TP는 0.006~0.037 mg/L의 범위에서 변동하였다. 장기평균 대비 TP는 전 기간에 걸쳐 지속적으로 높은 수준을 보이기보다는 특정 시기와 정점에서 단기적으로 증가하였다(Fig. 3(b)). 이는 외부 기원 영양염의 일시적 유입으로 인해 특정 지점에서 간헐적 상승이 일어날 수 있다는 Hwang et al. (2017)의 결과와 유사하다. Chl-a는 2014년 3.4~10.9 mg/m3, 2015년 4.7~17.0 mg/m3로 나타났으며, 2024년에는 1.1~19.3 mg/m3로 변동폭이 확대되었다. 장기평균과 비교했을 때 Chl-a는 WT와 TP보다 연도별·정점별 차이가 뚜렷하였다(Fig. 3(c)). 2014년에는 대체로 장기평균보다 낮거나 유사한 수준이었으나, 2015년에는 7~9월을 중심으로 일부 정점에서 증가하였다. 2024년에는 8~10월에 Chl-a 증가가 뚜렷하였고, 특히 UM3에서 높은 값이 관측되었다.
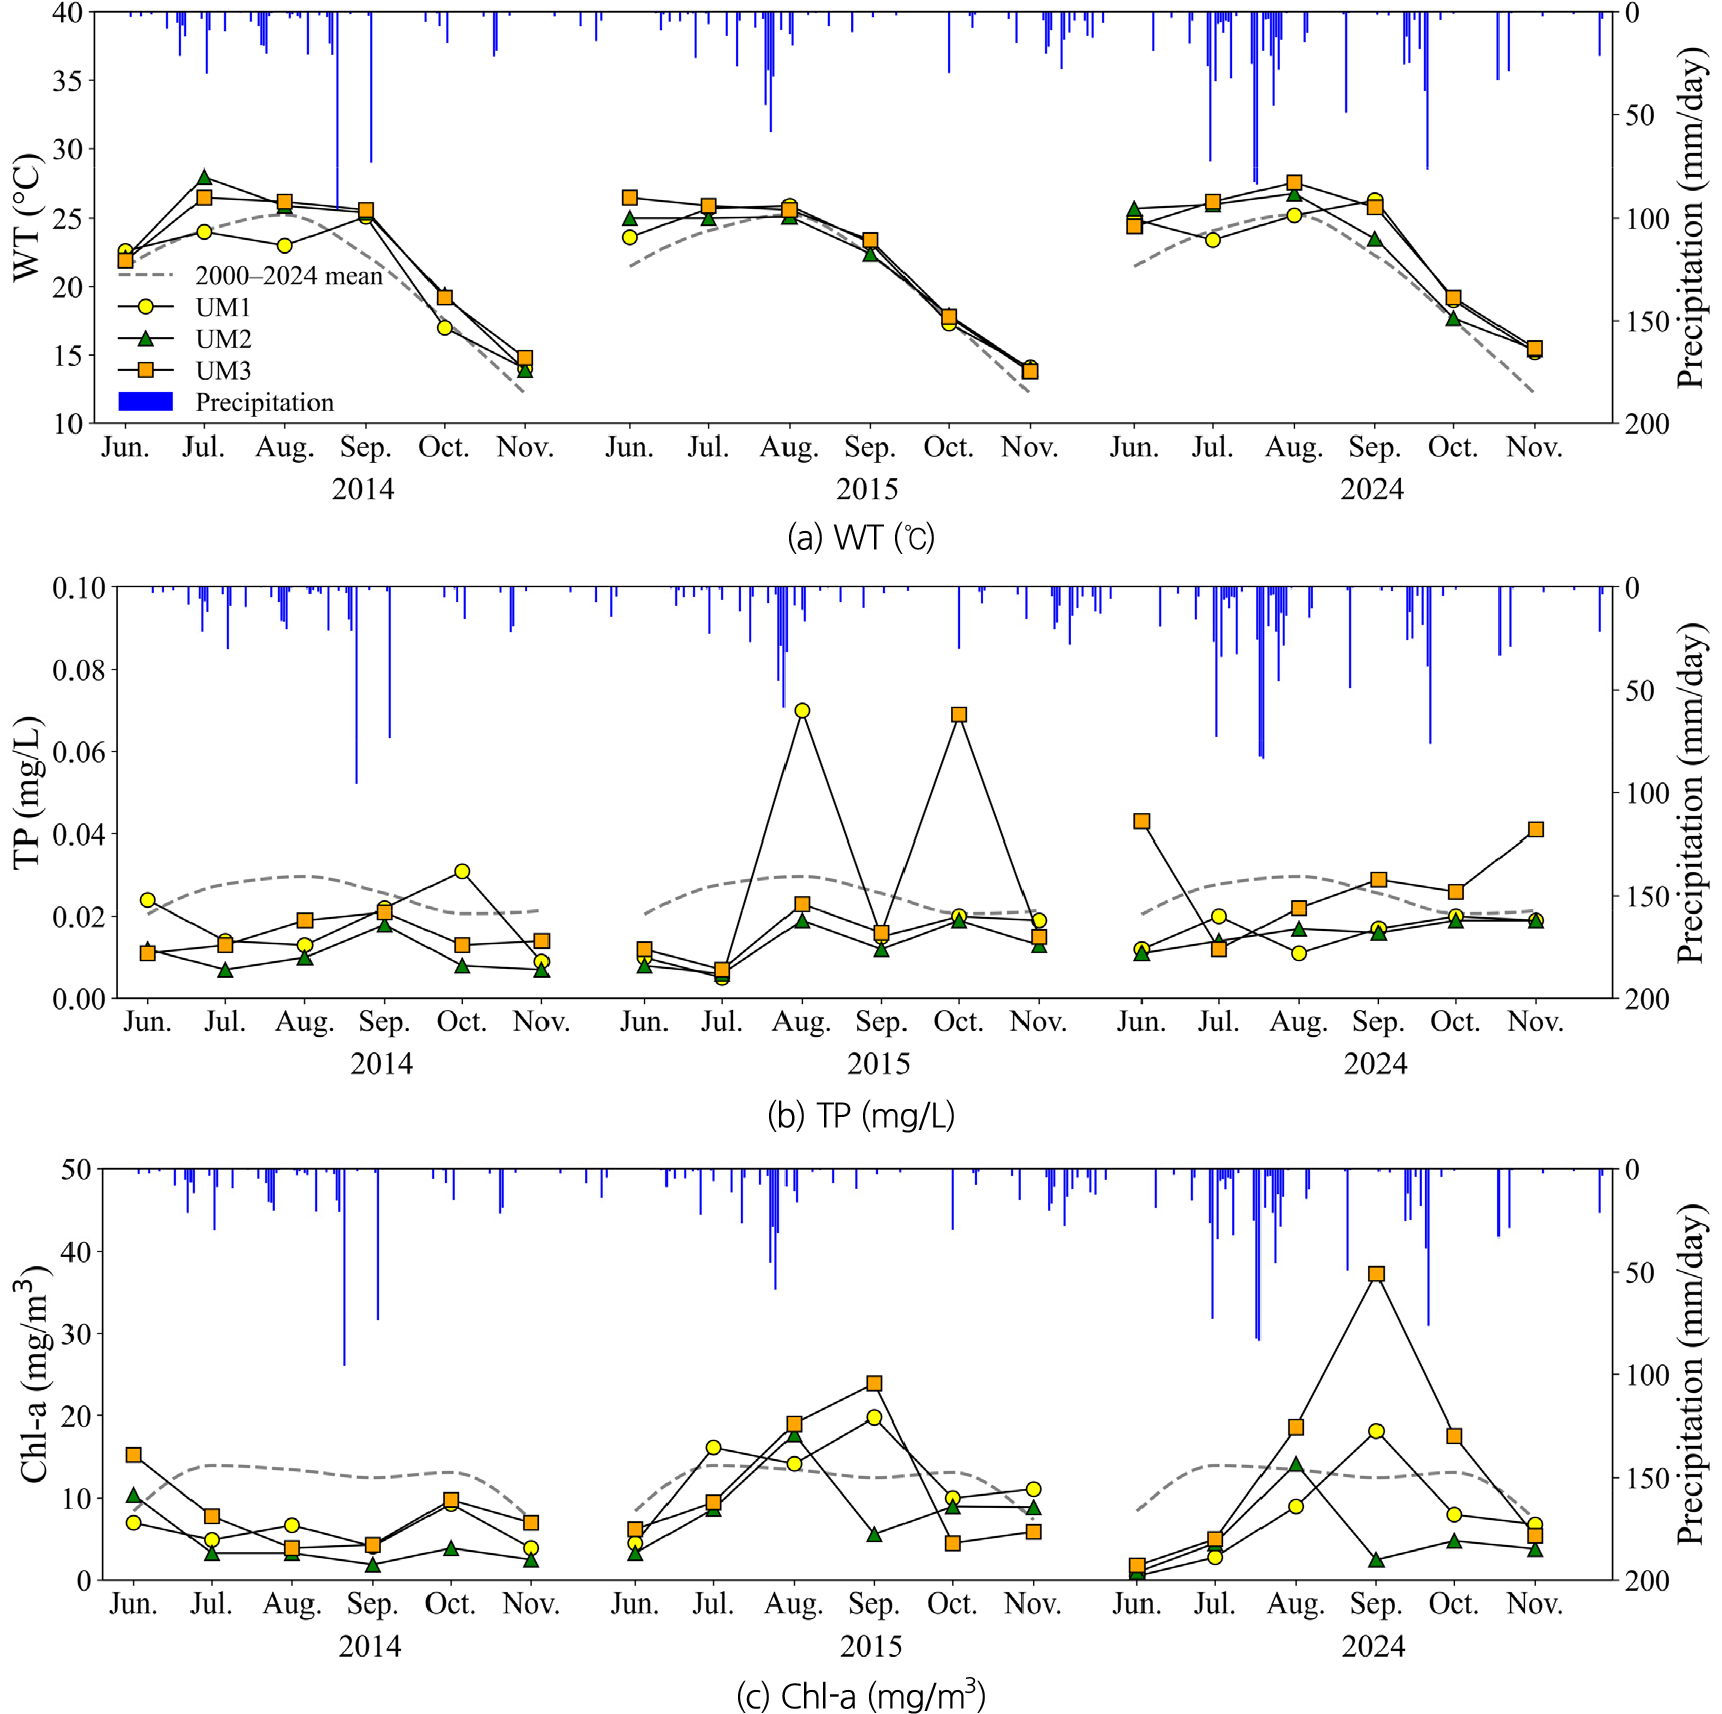
특히, TSIko 기준으로 의암호의 영양상태를 분석한 결과, 조사기간 동안 의암호는 전반적으로 중영양 상태가 우세하였으나 2024년 8~10월에는 Chl-a 농도 증가와 함께 일부 정점에서 부영양 수준에 근접하는 경향이 나타났다. 2011~2023년 의암호 수질측정망 자료를 분석한 결과에서도 연중 중영양 상태를 유지하면서 여름철에는 부영양 수준까지 상승하는 경향이 확인되었으며, 이는 Kim et al. (2007) 및 Jeong et al. (2014)에서 나타난 결과와 유사하다. 이러한 장기적 경향을 고려할 때, 의암호는 하절기를 중심으로 부영양화가 심화될 수 있음을 보여준다.
3.3 식물플랑크톤 정량 분석 결과
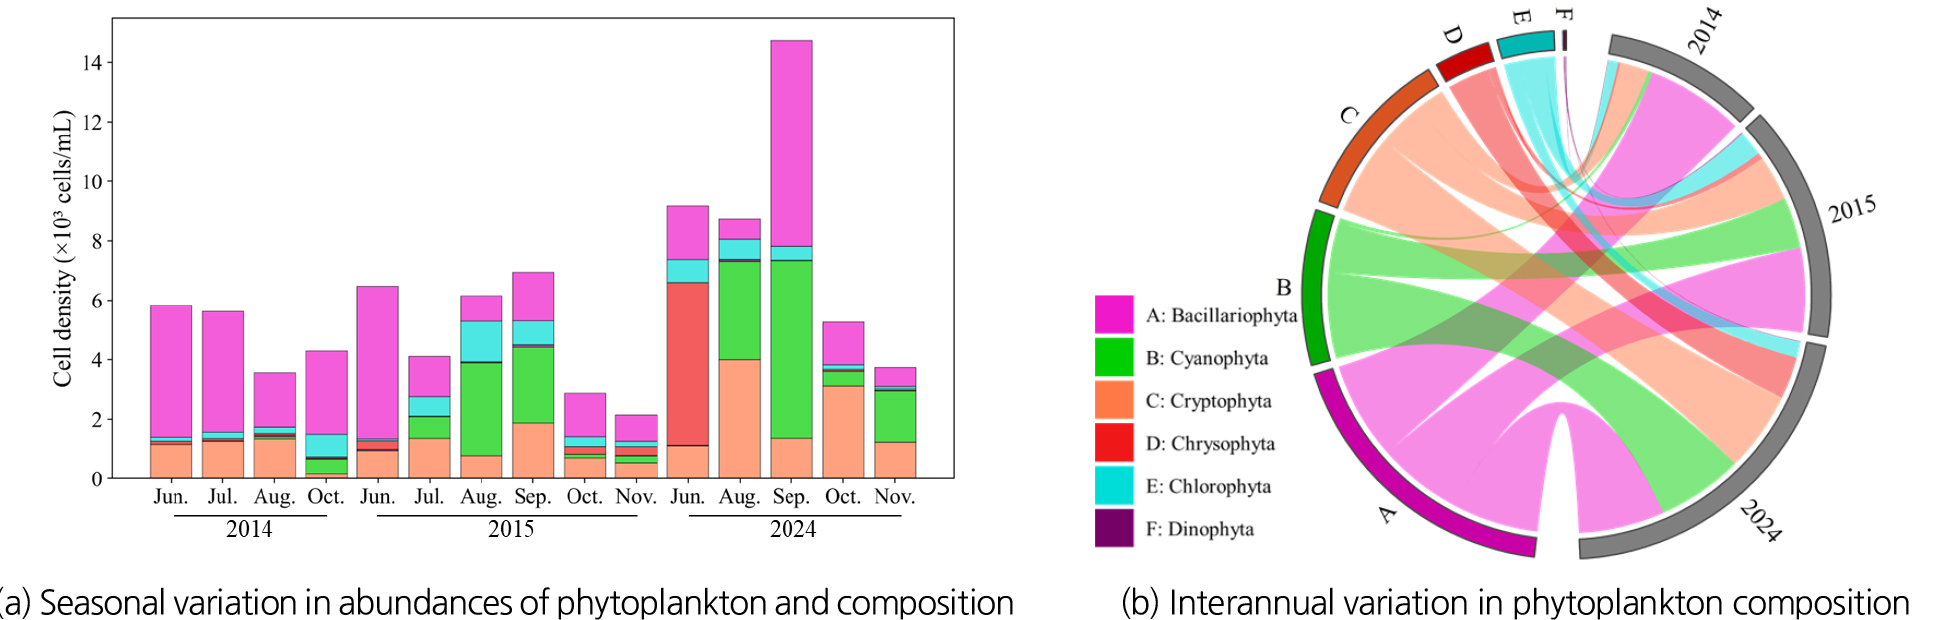
식물플랑크톤 군집의 총 현존량과 주요 분류군 조성 변화는 2014년, 2015년 및 2024년에 수행된 조사자료를 바탕으로 분석하였다(Fig. 4). 식물플랑크톤 총현존량은 2014년 1,560~8,320 cells/mL (6월 UM2 최대), 2015년 1,526~14,401 cells/mL (9월 UM1 최대) 범위로 나타났으며, 2024년에는 2,172~26,116 cells/mL로 세 조사연도 중 가장 높은 현존량과 변동폭을 보였다(Fig. 4(a)). 2024년 최대 현존량은 2014년 대비 약 3배, 2015년 대비 약 1.8배 높은 수준으로, 2024년에 식물플랑크톤 현존량 증가와 함께 변동성이 확대된 것으로 나타났다.
분류군 조성은 조사연도별로 차이를 보였다(Fig. 4(b)). 2014년에는 조사기간 동안 규조류(Bacillariophyta)가 55.8~76.4% 범위에서 지속적으로 우점하며 규조류 중심의 군집 구조를 유지하였다. 2015년에는 6월 규조류 우점(80.4%) 이후 남조류(Cyanophyta) 및 은편모조류(Cryptophyta)의 점유율이 증가하였으며, 특히 8월에는 남조류 점유율이 51.0% (3,124 cells/mL)까지 증가하였다. 2024년에는 6월 황갈조류(Chrysophyta)가 52.6%로 높은 구성비를 보였고, 8~9월에는 남조류의 구성비가 각각 37.2%와 37.5%로 증가하였다. 8~9월의 남조류 현존량은 각각 3,321 cells/mL와 6,011 cells/mL로 나타나, 남조류 증가는 상대적 비중뿐만 아니라 현존량 증가를 동반한 것으로 확인되었다. 일반적으로 집중호우는 유역 유출과 하천 유입을 통해 외부 기원 영양염 부하를 증가시킬 수 있으며, 이러한 영양염 공급은 이후 고수온 조건과 결합하여 남조류 증식에 유리한 환경을 조성할 수 있다(Paerl and Paul, 2012; Huisman et al., 2018). 특히 강우에 따른 인 부하 증가 이후 수 주 이내에 남조류 증가가 나타날 수 있음이 보고된 바 있어(Carpenter et al., 2022), 본 연구에서 2024년 8월에 관찰된 남조류 구성비 및 현존량 증가는 7월 집중호우 이후 외부 영양염 유입의 지연 반응과 관련되었을 가능성이 있다.
3.4 식물플랑크톤 군집 구조 변화
식물플랑크톤 군집의 우점속 구성 분석 결과, 2024년에는 과거 조사연도인 2014년 및 2015년과 구별되는 군집 구조적 특징이 나타났다(Fig. 5, Table 2). 한강수계위원회의 장기 모니터링 자료(2008~2013년)를 분석한 결과, 의암호는 전반적으로 규조류가 연중 높은 점유율을 차지하는 수생태계 특성을 보여왔다(HWMC, 2014). 구체적으로 봄부터 초여름에는 Stephanodiscus, Asterionella, Fragilaria 등이 증가하고, 하절기에는 남조류가 일시적으로 출현한 후, 추계에는 Aulacoseira 등 규조류가 다시 우점하는 양상이 보고되었다. 2014년과 2015년 역시 온대 호수의 플랑크톤 생태학적 천이 모델(PEG model)에 비교적 부합하는 양상을 보였다(Reynolds, 2006). 2014년에는 Fragilaria, Aulacoseira 등 규조류 중심의 안정적인 구조가 조사기간 동안 지속되었으며, 2015년에는 6월 Cyclotella 우점 이후 하절기 수온 상승에 따라 남조류(Dolichospermum)가 부상하고, 11월에는 다시 규조류(Aulacoseira)가 우점하였다.
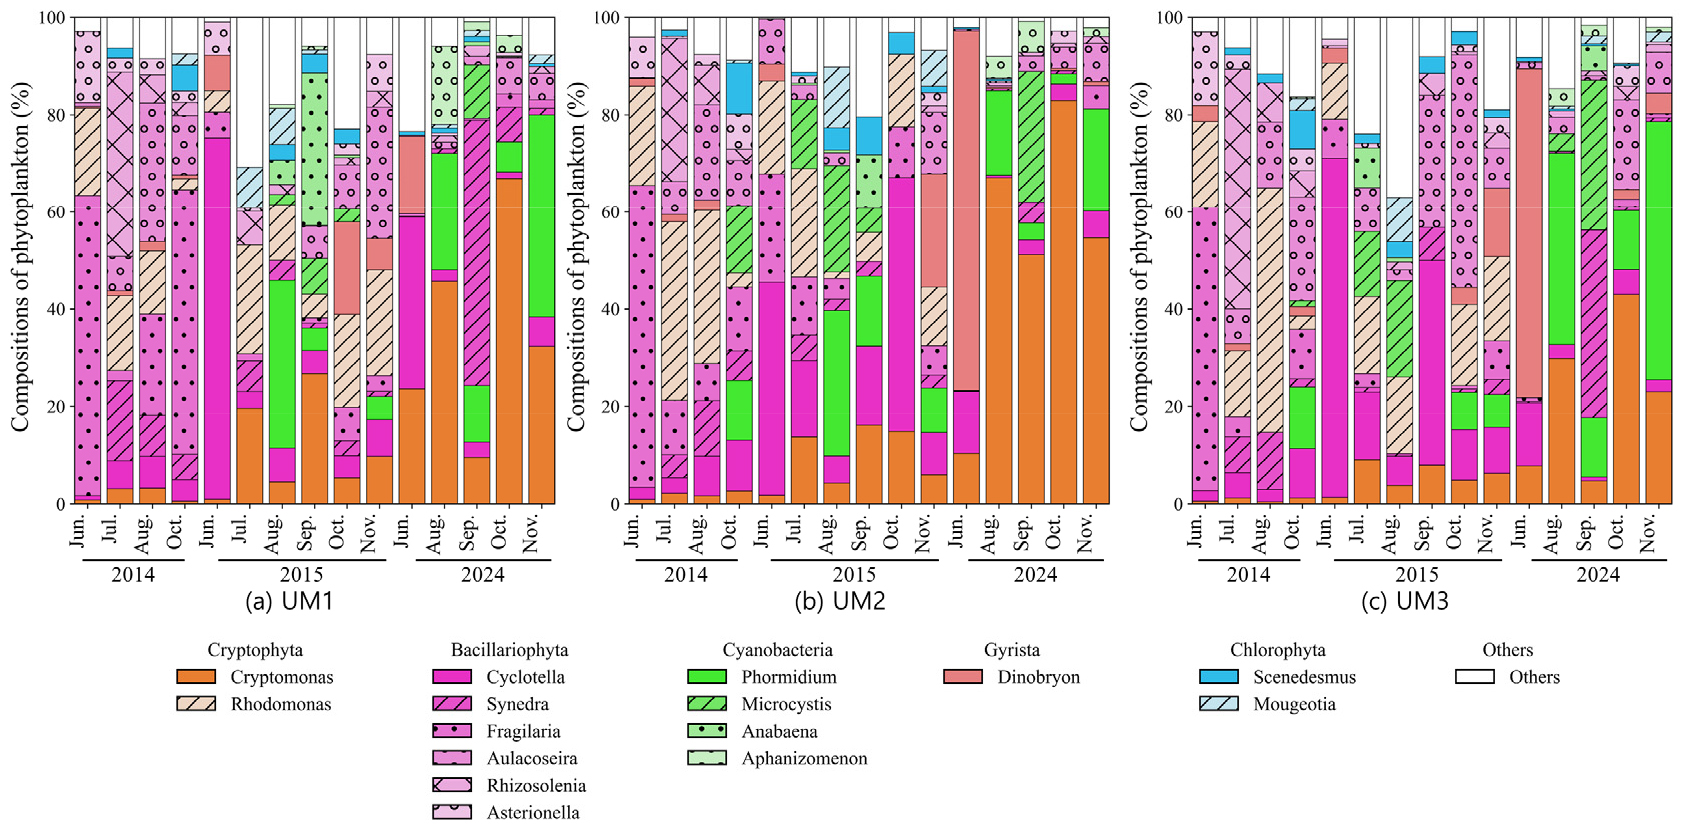
Table 2.
Monthly dominant and sub-dominant phytoplankton genera in Lake Uiam (2014, 2015, and 2024)
| Year | Month | Dominant genus |
Dominance (%) | Abundance (cells/mL) | Sub-dominant genus |
Dominance (%) |
Abundance (cells/mL) |
| 2014 | Jun. | Fragilariaa | 60.8 | 3,547 | Rhodomonasa | 18.8 | 1,093 |
| Jul. | Rhizosoleniab | 41.2 | 2,293 | Rhodomonasa | 20.4 | 1,136 | |
| Aug. | Rhodomonasva | 36.6 | 1,277 | Aulacoseirab | 18.4 | 643 | |
| Sep. | - | - | - | - | - | - | |
| Oct. | Fragilariab | 29.1 | 1,233 | Aulacoseirab | 14.4 | 610 | |
| Nov. | - | - | - | - | - | - | |
| 2015 | Jun. | Cyclotellab | 59.4 | 3,842 | Fragilariab | 13.7 | 883 |
| Jul. | Rhodomonasa | 19.5 | 792 | Cryptomonasa | 13.5 | 545 | |
| Aug. | Phormidiumc | 23.9 | 1,458 | Microcystisc | 14.9 | 907 | |
| Sep. | Dolichospermumc | 24.0 | 1,651 | Cryptomonasa | 22.6 | 1,558 | |
| Oct. | Aulacoseirab | 23.7 | 675 | Rhodomonasa | 17.2 | 492 | |
| Nov. | Rhodomonasa | 17.7 | 373 | Aulacoseirab | 16.2 | 341 | |
| 2024 | Jun. | Dinobryond | 59.7 | 5,483 | Cyclotellab | 17.3 | 1,589 |
| Jul. | - | - | - | - | - | - | |
| Aug. | Cryptomonasa | 45.6 | 3,994 | Phormidiumc | 29.0 | 2,535 | |
| Sep. | Synedrab | 42.2 | 6,227 | Microcystisc | 23.6 | 3,486 | |
| Oct. | Cryptomonasa | 59.4 | 3,130 | Aulacoseirab | 11.9 | 629 | |
| Nov. | Phormidiumc | 42.8 | 1,599 | Cryptomonasa | 32.5 | 1,215 |
반면 2024년에는 황갈조류 Dinobryon의 6월 우점, 하절기 Microcystis의 우점, 추계 Phormidium의 우점이 관찰되어 이전 조사연도와 다른 우점속 구성을 보였다. 이러한 차이는 기상·수문 조건과 수질환경의 차이에 식물플랑크톤 분류군의 기능적 특성이 결합된 결과로 해석된다. 2024년 6월은 선행강우(141.8 mm)와 HRT 단축(5.9일)으로 수체 혼합 및 물리적 교란 강도가 강화된 환경이었으며, 이 시기에 Dinobryon이 59.7%의 높은 비중을 보였다. Dinobryon은 편모를 이용한 유영 능력과 혼합영양(mixotrophy) 특성을 지니고 있어, 광 제한 또는 교란 조건에서 유기물 이용을 통해 경쟁력을 가질 수 있는 것으로 알려져 있다(Heinze et al., 2013; Ballen-Segura et al., 2017). 따라서 2024년 6월의 Dinobryon 우점은 강우 이후 형성된 혼합·교란 환경 속에서 기능적 특성이 반영된 결과로 판단된다.
2024년 하절기에는 Microcystis가 주요 우점속으로 부상하였다. 의암호를 대상으로 한 선행연구에서는 2012~2015년 남조류 발생 시 Dolichospermum이 주요 우점 남조류로 보고되었으며(Lee et al., 2016), 북한강 수계를 대상으로 한 연구에서도 하절기에 Dolichospermum, Microcystis, Pseudanabaena 등이 주요 분류군으로 출현하는 것으로 보고되었다(Baek et al., 2019). 그러나 본 연구의 2024년에는 Dolichospermum보다 Microcystis가 높은 현존량으로 우점하여, 기존에 보고된 Dolichospermum 중심의 남조류 출현 양상과는 구별되는 특징을 보였으며, 11월에는 남조류인 Phormidium이 우점하였다. Baek et al. (2019)은 북한강 수계에서 하절기 이후 남조류 우점이 약화되고 11월부터 규조류가 다시 우점하는 경향을 보고하였으나, 본 연구의 2024년 11월에는 Phormidium이 우점하여 이와는 구별되는 출현 특성을 나타냈다. 이 시기 수온은 15.4℃로 비교적 높게 유지되었고, HRT는 21.5일로 2015년 11월(54.7일)보다 짧아 수체의 안정화보다는 혼합과 유동성이 유지되는 환경이 형성되었을 가능성이 있다. Phormidium은 저서성 또는 부착성 생육 특성과 물리적 교란에 대한 저항성을 지닌 것으로 보고되어 있어(McAllister et al., 2016; Wood et al., 2020), 2024년 11월의 Phormidium 우점은 높은 수온, 짧은 HRT 및 이러한 생태적 특성이 복합적으로 작용한 결과로 판단된다.
이와 더불어, 2024년 하절기 남조류 발생은 공간적으로도 불균질하게 나타났으며, 이러한 양상은 8~9월에 가장 뚜렷하였다. 9월 기준 총 현존량은 UM3에서 26,084 cells/mL로 나타나 같은 시기 UM1(15,592 cells/mL) 및 UM2(2,526 cells/mL)보다 높은 수준을 보였으며, 이 중 Microcystis가 9,960 cells/mL (약 31%)로 우점하여 조류경보제 경계단계 기준에 근접하였다. 같은 시기 UM1에서도 Microcystis가 검출되었으나 그 비중(11%)은 UM3보다 낮았으며, UM2에서는 총 현존량 자체가 낮아 남조류 세포수 역시 UM3에 미치지 못하였다. 이러한 공간적 이질성은 UM3의 환경적 특성에서 비롯된 것으로 판단된다. UM3는 도시하천 및 하수처리장 방류수의 유입과 국지적 체류 특성으로 인해 영양염이 축적되기 용이한 수역으로 보고되어 왔다(Lee et al., 2016; Hwang et al., 2017). Microcystis는 고수온 및 충분한 영양염 공급 조건에서 증식과 우점이 강화되는 대표적인 남조류로 알려져 있다(Paerl and Paul, 2012; Xu et al., 2023). 본 연구에서도 2024년 하절기의 고수온 조건(약 25.2℃)과 UM3의 국지적 TP 증가(≥ 0.030 mg/L)가 함께 확인되었다. 이러한 점에서 2024년 하절기 남조류 우점은 의암호 전역에 균일하게 나타난 현상이라기보다, 고수온과 영양염 증가가 결합된 UM3에서 두드러지게 나타난 결과로 판단된다.
3.5 식물플랑크톤 군집의 공출현 네트워크 및 기여도 분석
식물플랑크톤 군집과 환경요인 간의 정량적 연관 구조를 파악하기 위해 공출현 네트워크와 PLS-PM 분석을 수행하였다. 2014년은 규조류 중심의 동시 출현 구조, 2015년은 남조류·녹조류가 혼재된 혼합 구조, 2024년은 남조류와 편모성 분류군이 함께 출현하는 양상이 확인되었다.
네트워크 분석 결과, 중심 분류군의 구성과 환경요인과의 연결 패턴이 연도별로 뚜렷하게 구분되었다(Fig. 6). 2014년에는 규조류가 네트워크의 중심을 형성하였다. Rhizosolenia (친화도 0.833), Fragilaria (0.818), Asterionella (0.752)가 높은 연결 중심성을 보였으며, Fragilaria와 Asterionella는 DO와 각각 양의 상관을 나타냈다(r = 0.427, p = 0.003; r = 0.446, p = 0.002). 이는 2014년 군집이 규조류 간 동시 출현 구조로 이루어졌음을 보여준다. 2015년에는 Pseudanabaena (0.976), Dolichospermum (0.766), Mougeotia (0.616), Cyclotella (0.592) 순으로 친화도가 높았으며, Dolichospermum과 Mougeotia는 Chl-a와 각각 유의한 양의 상관을 보였다(r = 0.498, p < 0.001; r = 0.477, p < 0.001). TN은 HRT (r = 0.656, p < 0.001)와 TOC (r = 0.450, p < 0.001)의 양의 상관이 확인되어, 2015년 군집 변화는 체류시간·영양염·유기물 조건이 함께 변동한 시기와 연관된 구조임을 보여준다.
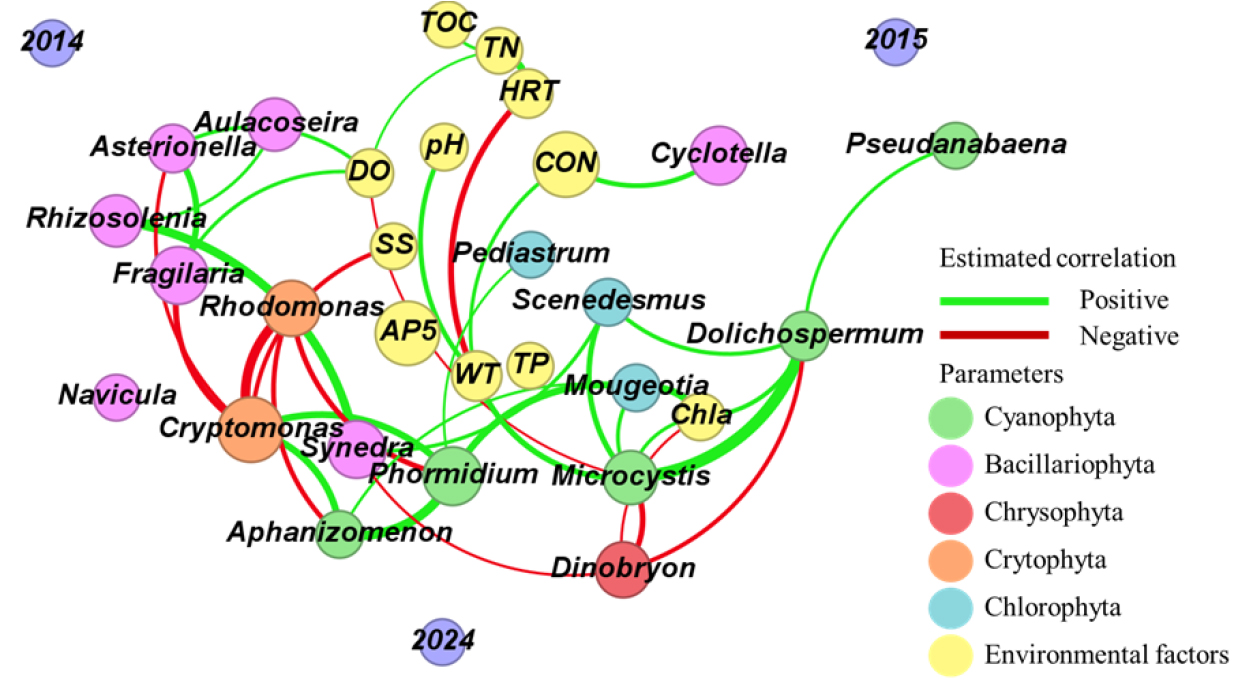
반면, 2024년에는 Aphanizomenon (0.951), Phormidium (0.745), Microcystis (0.685) 순으로 친화도가 높았으며, 남조류 간(Phormidium-Aphanizomenon, r = 0.668, p < 0.001) 및 남조류와 은편모조류 간(Cryptomonas-Aphanizomenon, r = 0.607, p < 0.001) 양의 상관이 나타났다. Microcystis는 WT (r = 0.545, p < 0.001) 및 Chl-a (r = 0.465, p < 0.001)와 양의 상관을, DO와는 음의 상관(r = -0.420, p < 0.01)을 보여, 고수온·저산소 조건과의 동반 출현 경향이 확인되었다. 이는 고수온 조건에서 Microcystis의 생장 경쟁력이 강화될 수 있다는 Paerl and Paul (2012) 및 Huisman et al. (2018)의 결과와 일치하며, 수온이 군집 천이의 주요 환경구배로 작용할 수 있다는 Trombetta et al. (2021)의 공출현 네트워크 결과와도 유사하다. 반면 Microcystis와 Dinobryon 간에는 음의 상관(r = -0.548, p < 0.001)이 나타나, 6월 Dinobryon 중심 군집과 하절기 이후 남조류 군집이 서로 다른 연관 구조로 구분되었음을 보여준다.
한편, TP는 일부 시기와 정점에서 농도 상승이 확인되었음에도 네트워크 내에서 식물플랑크톤 분류군과 유의한 상관을 보이지 않았다. 이는 담수 생태계에서 TP가 식물플랑크톤 생물량의 주요 제한요인으로 작용할 수 있다고 보고한 선행연구(Schindler, 1977; Smith et al., 1999)와 상반된 결과이다. 이러한 결과는 TP가 군집 변동을 직접적으로 설명하는 제한요인이라기보다, 남조류 생물량 증가가 가능한 TP 수준(TP ≥ 0.02 mg/L)에 도달해 있었기 때문일 가능성이 있다(Vuorio et al., 2020). 또한 의암호는 도시하천 유입부, 하수처리장 방류 영향권 및 정체성 수역이 공존하는 공간적으로 이질적인 수체로, UM3 정점에서 나타난 국지적 영양염 증가 신호가 전체 자료 기반의 네트워크 분석에서 약화되어 나타났을 가능성을 배제하기 어렵다. Xu et al. (2023)은 이와 유사하게 호소 전체 규모의 분석에서 국지적 영양염 유입의 영향이 과소평가될 수 있음을 지적한 바 있으며, 본 연구의 결과도 이러한 공간적 이질성의 영향을 부분적으로 받았을 가능성이 있다.
PLS-PM의 총효과(total effects)를 절대값 기준으로 비교한 결과, 기후 요인의 효과(0.91)는 HRT (-0.108) 및 영양염(-0.068)에 비해 약 8~13배 크게 나타나, 본 연구 자료 범위에서 기후 요인이 식물플랑크톤 군집 변동과 가장 강하게 연관된 요인임을 나타냈다(Fig. 7). 경로계수에서는 기후 요인과 HRT 간 경로(-0.539)가 가장 크게 나타났으며, 절대값 0.3 이상을 실질적 연결 강도의 기준으로 볼 때(Hair et al., 2017), 이는 강한 음의 관계에 해당한다. 따라서 고수온·강우 조건은 체류시간 단축과 함께 관찰된 것으로 해석된다. 반면 HRT (-0.108)와 영양염(-0.068)이 군집 구조에 미치는 직접효과는 절대값 0.3 미만으로 상대적으로 약하게 나타나, 의암호의 식물플랑크톤 군집 변동은 영양염 또는 체류시간의 직접효과보다는 기후 요인과 수문 조건의 복합적 변화와 더 밀접하게 연관되었음을 보여준다.
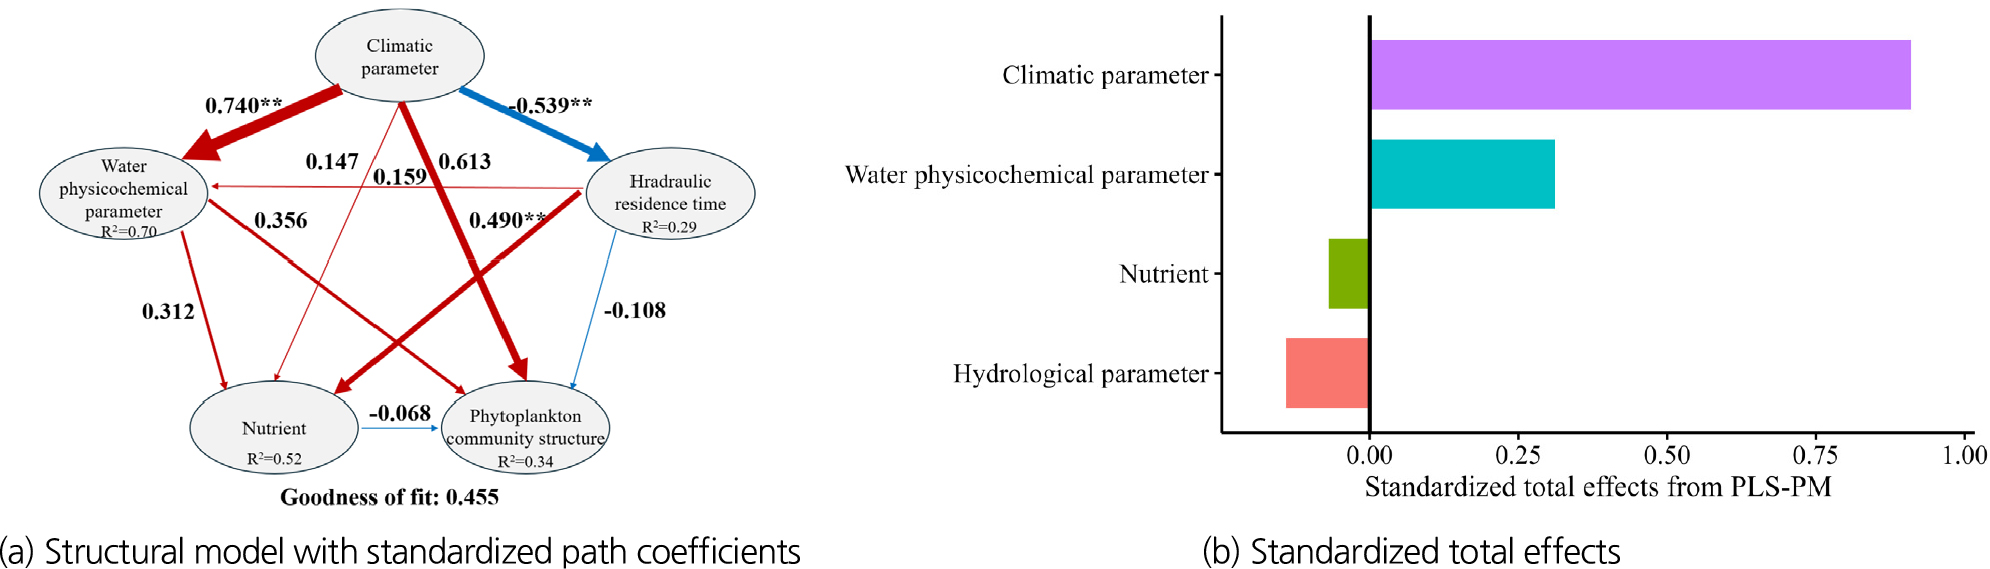
다만 본 연구에서는 호소 전체 평균 HRT를 일괄 적용하였으므로, 정점별 수리 특성에 따른 공간적 이질성이 분석에 충분히 반영되지 않았을 수 있다. 특히 UM3과 같이 국지적 정체가 예상되는 정점의 실제 체류시간은 평균 HRT보다 길었을 것으로 추정되며, 이로 인해 HRT의 직접효과가 다소 과소추정되었을 수 있다. 강우 이후 외부 유입에 의한 영양염·유기물 공급과 수체 안정화가 남조류 성장에 유리한 조건을 형성할 수 있다는 점은 Kozak et al. (2017) 및 Qi et al. (2024)에서도 보고된 바 있다. 본 연구에서도 2024년 8~9월 Microcystis 풍부도 증가는 고수온이 지속된 시기와 중첩되었으며, 강우 이후 수환경 변화와 함께 관찰되었다. 그러나 PLS-PM 및 네트워크 분석은 상대적 영향 경로를 탐색하는 분석이므로, 본 결과는 고수온이 지속되고 강우 이후 수환경 변동이 나타난 시기에 남조류 풍부도가 증가하는 경향을 보여준다.
4. 결 론
본 연구는 기상·수문 조건이 상이했던 2014·2015년과 2024년의 의암호 식물플랑크톤 군집 자료를 비교·분석하여, 기후 및 수환경 변동이 군집 구조와 우점속 교체 양상에 미친 영향을 평가하였다. 기존 의암호 및 북한강 수계 연구들이 특정 시기의 남조류 발생 양상이나 일부 수역의 수질 특성에 초점을 두었던 것과 달리, 본 연구는 기상·수문 조건이 뚜렷하게 구분되는 연도 간 비교에 공출현 네트워크 분석과 PLS-PM을 결합함으로써, 기후 변동성과 식물플랑크톤 군집 구조 변화의 연관성을 정량적으로 탐색하였다는 점에서 의의를 가진다.
분석 결과, 저강수와 긴 HRT가 특징적이었던 2014·2015년에는 규조류 중심의 안정적인 군집 구조가 유지되거나, 하절기 남조류가 일시적으로 증가한 후 추계에 규조류로 회복되는 양상이 나타나 온대 호소의 전형적인 계절 천이 패턴(PEG model)에 비교적 부합하였다. 반면 고수온 지속과 여름철 집중강우, 짧은 HRT가 동시에 나타난 2024년에는 6월 Dinobryon 우점, 하절기 Microcystis 우점 강화, 추계 Phormidium의 지속 출현이 순차적으로 확인되어, 기존 북한강 수계에서 보고된 Dolichospermum 중심의 남조류 출현 및 추계 규조류 회복 패턴과는 구별되는 군집 변동 양상을 보였다. 아울러 2024년 하절기 남조류 발생은 의암호 전역에서 균일하게 나타난 것이 아니라, 도시하천 및 하수처리장 방류수의 영향을 받는 UM3를 중심으로 국지적으로 강화되어 나타났으며, 이는 호소 전체 단위의 평균적 접근만으로는 포착되기 어려운 공간적 이질성이 의암호의 남조류 발생 양상에 내재되어 있음을 보여준다.
공출현 네트워크 및 PLS-PM 분석은 이러한 연도별·공간별 차이의 기저에 있는 환경적 연관 구조를 정량적으로 뒷받침하였다. 네트워크 분석에서 2014년은 규조류 간 동시 출현 구조, 2015년은 체류시간·영양염·유기물 조건과 연계된 남조류·녹조류 혼재 구조, 2024년은 고수온·저산소 조건과 결합된 남조류 중심 구조로 각각 구분되었다. PLS-PM에서는 기후 요인의 총효과가 HRT 및 영양염 요인보다 뚜렷하게 크게 나타나, 본 연구의 자료 범위 내에서는 기후 요인이 의암호 식물플랑크톤 군집 변동과 가장 강하게 연관된 요인으로 확인되었다. 다만 HRT와 영양염의 직접효과는 상대적으로 약하게 나타났는데, 이는 두 요인이 군집 변동에 미치는 영향이 작다기보다 호소 전체 평균값을 적용한 분석상의 한계와, UM3와 같은 정점에서 나타나는 국지적 정체 및 영양염 축적 효과가 전체 평균에 의해 일부 희석되었을 가능성을 함께 보여준다.
종합하면, 본 연구는 의암호의 식물플랑크톤 군집 변동이 단일 환경요인보다는 기후, 수문, 영양염 조건의 복합적 상호작용 및 공간적 이질성과 밀접하게 연관되어 있음을 정량적 분석을 통해 제시하였다. 이러한 결과는 향후 인공호 및 저수지의 남조류 관리에 있어 호소 전체 단위의 평균적 모니터링뿐 아니라, 국지적 정체 수역에 대한 지점별 감시와 체류시간의 공간적 분포를 함께 고려하는 통합적 관리 전략이 필요함을 보여준다. 향후 연구에서는 정점별 실측 HRT 산정과 보다 장기적인 시계열 자료의 축적을 통해, 기후변화에 따른 인공호 식물플랑크톤 군집의 공간적 반응을 보다 정밀하게 평가할 필요가 있다.